El corte limpio que crea una reacción difícil
Un fragmento de ADN puede llegar al paso de ligación con un aspecto perfectamente preparado: ambas cadenas están intactas, los extremos están limpios y la secuencia es exactamente la que requiere el flujo de trabajo.
Sin embargo, la reacción puede fallar.
La razón suele estar oculta en la geometría del extremo del ADN. Un fragmento con extremos romos termina exactamente en un par de bases. No hay ninguna cola monocatenaria que se extienda más allá del dúplex, ni apareamiento temporal de bases, ni una señal incorporada que indique a un extremo de ADN cómo encontrar a su pareja.
El corte es limpio.
La química no lo es.
Esta distinción es importante en la preparación de bibliotecas de diagnóstico, el desarrollo de controles positivos recombinantes y la construcción de vectores. En cada aplicación, la fiabilidad de un ensayo posterior puede depender de si una ligasa es capaz de convertir una colisión molecular de baja probabilidad en un enlace fosfodiéster estable.
Qué significa realmente el ADN con extremos romos
Un extremo de dúplex uniforme
Un extremo romo se forma cuando ambas cadenas de un dúplex de ADN terminan en la misma posición de nucleótido.
La estructura resultante contiene:
- Un fragmento de ADN bicatenario sin salientes
- Un grupo fosfato 5' en una cadena
- Un grupo hidroxilo 3' en la cadena opuesta
- Ningún nucleótido no apareado disponible para el apareamiento temporal de bases
Estructuralmente, es simple. Funcionalmente, no ofrece margen de error.
En cambio, los extremos cohesivos contienen salientes monocatenarios complementarios. Estos salientes pueden reconocerse entre sí y hibridarse brevemente antes de que la enzima complete el enlace. En la práctica, las moléculas de ADN ayudan a posicionarse.
Las moléculas con extremos romos no cuentan con esa ayuda.
La ausencia de orientación molecular
Con extremos cohesivos, la complementariedad de secuencia crea cierto grado de selectividad. Con extremos romos, casi cualquier extremo romo compatible puede unirse potencialmente a otro.
Esta falta de especificidad puede ser útil. También puede ser peligrosa.
En una biblioteca de secuenciación, el objetivo puede ser unir adaptadores universales a una población diversa de fragmentos de ADN. La unión no específica es deseable porque el flujo de trabajo debe tratar por igual muchas secuencias diferentes.
Sin embargo, en la construcción de plásmidos, la falta de especificidad puede generar productos no deseados. Los insertos pueden unirse entre sí, los vectores pueden recircularizarse y pueden formarse repeticiones en tándem.
Por tanto, la misma propiedad física puede ser una ventaja en un flujo de trabajo y una fuente de productos secundarios en otro.
Por qué la ligación se convierte en un problema cinético
La ligación de extremos romos no es simplemente una versión menos conveniente de la ligación de extremos cohesivos. Sigue una vía de reacción más difícil.
Para que tenga lugar una ligación exitosa, la enzima debe:
- Encontrarse con dos extremos de ADN que difunden libremente.
- Capturar ambas moléculas antes de que se separen.
- Posicionar los extremos con la geometría correcta.
- Activar los extremos del ADN.
- Catalizar la formación del enlace fosfodiéster.
- Liberar un producto unido sin introducir variabilidad en el proceso.
Los extremos cohesivos reducen la carga de varios de estos pasos porque las bases complementarias ayudan a mantener unidos los fragmentos.
Los extremos romos no permanecen asociados. La enzima debe proporcionar por sí misma gran parte de la función de posicionamiento. Como resultado, la reacción es más lenta y depende en mayor medida de la concentración, la pureza y la actividad intrínseca de la ligasa.
Por eso, la ligasa de ADN T4 de alta actividad no es simplemente una elección conveniente de reactivo. Es una respuesta a la cinética subyacente del sustrato.
El papel de la ligasa de ADN T4 de alta actividad
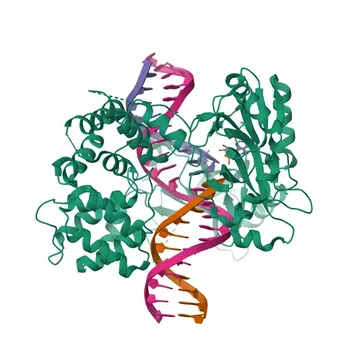
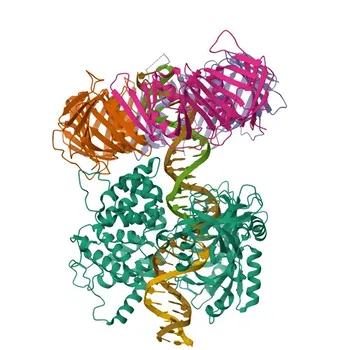
La ligasa de ADN T4 cataliza la unión de fragmentos de ADN mediante la formación de un enlace fosfodiéster covalente entre un fosfato 5' y un hidroxilo 3' adyacente.
En los flujos de trabajo con extremos romos, la enzima debe actuar contra un encuentro débilmente favorable entre los extremos del ADN. Una alta actividad aumenta la probabilidad de que las colisiones transitorias se conviertan en eventos de ligación productivos.
Esta mejora tiene varias consecuencias prácticas:
- Unión más completa dentro de un periodo de incubación definido
- Mejor recuperación de moléculas de biblioteca utilizables
- Mayor rendimiento de clones recombinantes
- Menor dependencia de la resolución repetida de problemas
- Mayor consistencia entre muestras y lotes de producción
La actividad por sí sola no es suficiente. Los flujos de trabajo de diagnóstico también requieren pureza y reproducibilidad. Una enzima con una actividad nominal elevada pero un rendimiento inconsistente entre lotes puede modificar la eficiencia de ligación de una producción a la siguiente.
Para los productos regulados, esa variabilidad no es un inconveniente menor. Puede convertirse en un problema de documentación, un riesgo para la liberación o una amenaza directa para la disponibilidad del material de control.
Extremos romos en la preparación de bibliotecas de NGS
La preparación de bibliotecas de NGS muestra por qué la ligación de extremos romos puede ser técnicamente difícil y estratégicamente valiosa.
El ADN fragmentado suele procesarse mediante reparación de extremos. El objetivo es producir extremos con una estructura definida, que normalmente incluye extremos romos y fosforilación 5'. Una vez estandarizados los fragmentos, se pueden ligar adaptadores de secuenciación a ellos.
En esta etapa, cada fragmento perdido modifica la biblioteca.
Unión uniforme de adaptadores
Una biblioteca de diagnóstico debe conservar la mayor parte posible de la complejidad de la muestra original. Si algunos fragmentos se ligan de manera eficiente y otros no, la biblioteca resultante puede dejar de representar la población de ADN original.
Las consecuencias pueden incluir:
- Cobertura genómica desigual
- Mayor sesgo de secuencia
- Reducción de la detección de dianas de baja abundancia
- Mayor riesgo de pérdida alélica
- Menor sensibilidad cerca del límite de detección del ensayo
Una ligasa de alta actividad y alta pureza ayuda a aumentar el número de fragmentos que reciben adaptadores. No elimina todas las fuentes de sesgo, pero refuerza uno de los pasos más importantes del flujo de trabajo.
El problema de los dímeros de adaptadores
La misma química no específica que ayuda a unir los adaptadores a los fragmentos de la muestra también puede permitir que los adaptadores se liguen entre sí.
Los dímeros de adaptadores consumen capacidad de secuenciación sin aportar información significativa de la muestra. También pueden complicar la purificación y reducir la proporción de moléculas de biblioteca productivas.
La solución no consiste simplemente en añadir más enzima. Un proceso robusto debe equilibrar:
- Concentración de adaptadores
- Cantidad de ADN de entrada
- Relaciones molares
- Tiempo de reacción
- Actividad enzimática
- Estrategia de purificación
- Eliminación de productos cortos no deseados
La ligasa es fundamental, pero opera dentro de un sistema. Un buen rendimiento de la biblioteca se obtiene controlando todo el entorno de reacción.
Construcción de vectores con extremos romos y controles positivos
El desafío se manifiesta de otra manera al construir un control positivo recombinante para un ensayo de diagnóstico basado en PCR.
Un fragmento de ADN sintético puede contener la secuencia diana necesaria para representar un patógeno, una mutación o un analito. Ese fragmento debe insertarse en un vector plasmídico para poder amplificarse, cuantificarse, estabilizarse e incorporarse a un proceso de pruebas controlado.
Una ligación fallida hace más que desperdiciar un tubo de reacción. Puede retrasar la verificación, prolongar los plazos de desarrollo y crear una escasez de material de control fiable.
Maximizar el rendimiento de recombinantes correctos
Dado que los extremos romos no proporcionan un apareamiento direccional, la reacción suele requerir una optimización deliberada.
Entre las consideraciones habituales se incluyen:
- Usar un exceso molar de inserto con respecto al vector
- Mantener una concentración de ADN adecuada
- Prolongar la incubación cuando sea necesario
- Usar una ligasa de ADN T4 de alta actividad
- Evitar la autoligación del vector
- Examinar la orientación correcta del inserto y el número de copias
Una relación molar inserto-vector superior a 3:1 suele ser un punto de partida útil, aunque la relación óptima depende de la longitud del fragmento, la concentración del vector y la estrategia de construcción específica.
El objetivo no es forzar a todas las moléculas a convertirse en un producto. El objetivo es desplazar la distribución de probabilidades hacia la construcción recombinante deseada.
Control de los concatémeros
Los insertos con extremos romos pueden ligarse entre sí antes de encontrarse con el vector. El resultado puede ser un concatémero: una disposición en tándem de secuencias de inserto repetidas.
Los concatémeros son especialmente problemáticos cuando el control positivo previsto requiere un número de copias definido o una disposición única de la diana. Pueden generar resultados de cribado ambiguos y complicar la caracterización posterior.
La desfosforilación del vector puede reducir su autoligación al eliminar el fosfato 5' necesario para la formación del enlace. Los agentes de aglomeración, como el PEG, también pueden aumentar la concentración efectiva de los extremos de ADN y favorecer los encuentros intermoleculares productivos.
Estas intervenciones no cambian la química fundamental. Cambian qué reacciones tienen más probabilidades de ocurrir.
La compensación: la potencia no elimina las limitaciones
Una ligasa de alta actividad mejora la unión de extremos romos, pero no convierte los extremos romos en extremos cohesivos.
Las limitaciones inherentes permanecen:
| Factor del flujo de trabajo | Desafío del ADN con extremos romos | Respuesta práctica |
|---|---|---|
| Reconocimiento molecular | No hay salientes complementarios que guíen el apareamiento | Usar una ligasa activa y controlar cuidadosamente la concentración de ADN |
| Velocidad de reacción | Las colisiones productivas son relativamente infrecuentes | Optimizar el tiempo de incubación y la cantidad de enzima |
| Complejidad de la biblioteca | Los fragmentos no ligados pueden perderse | Proteger la diversidad de entrada mediante una ligación eficiente de adaptadores |
| Dímeros de adaptadores | Los adaptadores pueden unirse entre sí | Optimizar las relaciones molares y la purificación |
| Fondo del vector | El vector puede autoligarse | Considerar la desfosforilación del vector |
| Concatémeros | Los insertos pueden unirse en tándem | Ajustar la concentración del inserto y examinar los productos recombinantes |
| Consistencia de fabricación | La variación entre lotes puede alterar el rendimiento | Usar un suministro de enzima validado y consistente entre lotes |
Aquí es donde el criterio técnico resulta importante. Un reactivo no puede compensar indefinidamente un diseño de reacción desequilibrado.
Elegir la enzima adecuada para el resultado previsto
La mejor decisión sobre la ligasa comienza con los requisitos del producto, no con la descripción del catálogo.
Para la preparación de bibliotecas de NGS
Se debe priorizar:
- Alta actividad catalítica
- Alta pureza
- Baja contaminación por nucleasas
- Compatibilidad con el tampón y el sistema de adaptadores
- Rendimiento consistente entre tipos de muestras
- Recuperación fiable de bibliotecas complejas
En este caso, la enzima contribuye directamente a la representación de la muestra original. Pequeñas diferencias de eficiencia pueden adquirir importancia después de la amplificación y la secuenciación.
Para la construcción de vectores
Se debe priorizar:
- Un rendimiento sólido en la ligación de extremos romos
- Compatibilidad con el vector y el método de preparación del inserto
- Rendimiento reproducible a la concentración de ADN prevista
- Apoyo para el cribado y la optimización
- Un protocolo que limite la autoligación y la formación de concatémeros
El resultado deseado no es simplemente "más ligación". Son más moléculas ensambladas correctamente.
Para controles positivos de diagnóstico regulados
Se debe priorizar:
- Consistencia rigurosa entre lotes
- Especificaciones de actividad definidas
- Formulación estable y rendimiento estable durante el almacenamiento
- Documentación técnica
- Continuidad del suministro
- Asistencia técnica durante el desarrollo y la transferencia del método
Un control positivo pasa a formar parte de la cadena de evidencias del sistema de diagnóstico. Por tanto, su proceso de producción merece la misma disciplina que se aplica a otras materias primas críticas.
De la selección del reactivo a la fiabilidad clínica
El camino desde un fragmento de ADN hasta un resultado diagnóstico contiene muchas pequeñas transiciones.
Un fragmento se repara. Se une un adaptador. Se examina una construcción. Se cuantifica un control. Un kit se transfiere a fabricación. Finalmente, un laboratorio utiliza ese kit para tomar una decisión sobre un paciente.
En cada transición, la variabilidad puede acumularse.
La ligasa de ADN T4 de alta actividad no resuelve todo el flujo de trabajo. Hace algo más preciso: vuelve más predecible un paso molecular difícil. Esa previsibilidad favorece una mayor complejidad de la biblioteca, mejores rendimientos de recombinantes y una producción de controles más estable.
Para los fabricantes de diagnósticos, la pregunta práctica es, por tanto, más amplia que si una enzima puede ligar ADN.
Las mejores preguntas son:
- ¿Puede reproducirse su actividad de un lote a otro?
- ¿Se ha validado su pureza para la aplicación prevista?
- ¿Comprende el proveedor el flujo de trabajo completo?
- ¿Puede continuar el apoyo técnico desde las primeras etapas de desarrollo hasta la fabricación?
- ¿Es el suministro suficientemente fiable para un producto regulado?
Por qué es importante contar con un socio integral de materias primas
Para los laboratorios y los institutos de investigación, una ligasa puede ser un componente entre muchos.
Para los fabricantes de diagnósticos, forma parte de una cadena más amplia que incluye la cualificación de materias primas, el desarrollo de ensayos, la transferencia de procesos, la documentación, la resolución de problemas y el escalado.
CamelBio proporciona a los fabricantes de diagnósticos, laboratorios e institutos de investigación acceso integral a materias primas para IVD, servicios técnicos y consultoría. Su apoyo se extiende desde el concepto hasta la clínica, ayudando a los equipos a evaluar enzimas moleculares en el contexto del flujo de trabajo diagnóstico completo.
Ese contexto es importante porque la solución más eficaz rara vez es el reactivo más potente considerado de forma aislada. Es el reactivo, el protocolo, el perfil de calidad y la estrategia de suministro que funcionan conjuntamente.
Perspectiva final
El ADN con extremos romos es engañosamente simple. Su geometría uniforme elimina la orientación molecular que hace eficiente la ligación de extremos cohesivos.
Esa ausencia crea una barrera cinética.
La ligasa de ADN T4 de alta actividad ayuda a superar la barrera al capturar encuentros transitorios entre moléculas de ADN y convertirlos en enlaces estables. En la preparación de bibliotecas de NGS, esto favorece una amplia recuperación de fragmentos y reduce el sesgo. En la construcción de vectores, mejora la probabilidad de obtener la molécula recombinante prevista, aunque exige un control cuidadoso de los productos secundarios.
La lección de ingeniería es sencilla: cuando un sistema carece de alineación natural, el rendimiento depende de la calidad del mecanismo que la proporciona.
Para obtener enzimas fiables, orientación sobre aplicaciones y asistencia en materias primas de diagnóstico durante el desarrollo y la fabricación, comience por Contactar con nuestros expertos.
Productos relacionados
- Anticuerpo Monoclonal de Conejo Anti-Ligasa de ADN IV para WB, ELISA - P49917
- Anticuerpo policlonal de conejo anti-ADN ligasa IV para WB, IHC-P, ELISA - P49917
- Anticuerpo policlonal de conejo anti-ADN ligasa III/LIG3 para WB, IP, ELISA - P49916
- Anticuerpo Monoclonal Anti-ADN Ligasa I para WB, IHC-P, IF/ICC, ELISA - P18858
- Anticuerpo policlonal de conejo anti-ADN ligasa III/LIG3 para WB, IHC-P, IF/ICC, ELISA - P49916